第十七章 孟德爾遺傳學的成長-2
摩根研究小組對果蠅的白眼基因以及果蠅的其他突變型的研究明確地證明了一個基因可以突變成另一個等位基因,後者又能突變成第三、第四個等位基因。同樣值得注意的是這些突變步驟是可逆的,白眼果蠅偶爾也能產生紅眼後代。也許最重要的發現是某個基因一旦產生了新等位基因,這新的等位基因就一直保持不變,除非其後代之一發生了新突變。因此基因的特點是,它的幾乎完全穩定性。基因突變的發現並不是退回到軟式遺傳,恰恰相反,這證實了遺傳物質是基本固定不變的。可以這樣說,這是硬式遺傳的決定性徵明,即儘管遺傳物質直其內在的穩定性,然而它又具有進化演變所容許的突變能力。
這些例外情況的數值通常多是按德弗里提出的單位交換的隨意性這種偶然過程來解釋。但是根據1900年代早期的細胞學研究可以作出不同的答案。自從波弗利和赫特維克的開拓性工作以後的20年對減數分裂細節的研究已取得長足進展。在第一前期中染色體(染色物質)的變化至少可以分為6個階段。其中有一個階段兩個成對的染色體仍然很細,但是每個染色體已分開成染色質絲(染色單體),即所謂四線期。這兩個染色單體彼此反覆交叉形成波狀環。
在早期的實驗中有一些結果相互矛盾。穆勒(Muller,1916)指出在一個長染色體上可能發生雙交換而且交叉的存在將干擾在染色體上與交叉鄰近處的進一步交換。考慮到這兩種新發現的現象(雙交換與干擾)就排除了上述矛盾,摩根的一些反對者正是利用這些矛盾來懷疑交換學說的正確性。
這些研究中最重要的發現可能是了解到原核生物(細菌、藍綠藻)和高等生物具有相同的遺傳物質(核酸),但是由核酸組成的染色體的類型和高等生物的不一樣。然而正是因為這些原核生物的DNA(或RNA)的組織結構非常簡單,所以特別適合於進行某些類型的遺傳學分析,尤其是基因功能和基因調節控制。因此一直到1970年早期分子遺傳學的大部分研究都是採用原核生物作實驗材料。
在波弗利和E.B.威爾遜以後,染色體研究仍然非常富有成果。細胞遺傳學、即染色體研究的發現和遺傳學研究的發現兩者的集成綜合,由於下列工作而迅速發展:麥克林托克(1929)對玉米粗線期染色體的分析研究,Heitz與Bauer(1933)重新發現雙翅目昆蟲的巨大多線染色體,C.D.Darlinston對遺傳系統的研究,M.J.D.White的研究,以及日益擴大的細胞學者隊伍的研究。1970年代染色體研究又進入了一個新的活躍時期。
減數分裂(Reduction division)
就物理主義者來說,這就是遺傳現象的形態學說明,在原則上和古老的雛型人概念並沒有什麼不同。貝特森和約翰遜按照他們自己的觀點特地批判了染色體學說的形態學解釋。
只要無法區分遺傳型和表現型,顆粒論者就不得不按遺傳因子和體質性狀之間一對一的關係的某種先成論考慮問題。某些承認單位性狀學說的學者認為某個生物有多少性狀就有多少遺傳因子。因而以一貫性和邏輯性著稱的魏斯曼主張在一切發育階段中不同的性狀必然有不同的定子,例如不僅是成蝶翅膀上的可以獨立變化的每一性狀而且同樣還有毛蟲的每個性狀都有其定子。由於或多或少地認為遺傳物質通過繁殖與生長直接轉變成表現型是理所當然的事,所以這不單是一種邏輯結論而且可以說是一種必然的結論。
反倒是形成了一組四個精|子,它們是從進.人減數分裂過程的精母細胞中的一個細胞核產生的,這一點赫特維克(1890)早已指出過。由於在第二次減數分裂中染色體數目並沒有增加一倍,所以這四個精|子的染色體數目同樣也只是二倍體的體細胞的一半。我在這裏所介紹的只是減數分裂中所發生事態的最後解釋,全部過程的細節是由VanBeneden,赫特維克,魏斯曼以及其他人的發現和解釋聯綴而成;Churchill(1970)曾就對這一問題的認識發展過程作過精採的闡述。起初,赫特維克和魏斯曼在解釋上彼此意見分歧很大,這有兩個重要原因。赫特維克多少相信融合遺傳,父本和母本的染色體在受精時彼此融合,他認為在每次細胞分裂后染色體被溶解,在下一輪細胞分裂前又重新由染色顆粒組成。就地看來,極體的排除單純是染色物質的量的減少。相反,魏斯曼則認為受精後父本和母本的染色體一直分開,他還認為每個染色體在有絲分裂、減數分裂以及隨後的靜止期的全部過程中都保持連續性。在這兩個問題上魏斯曼的設想後來都證明是正確的。從上述爭論中得出的最重要結論是,被卵排出的極體所含的染色體的含量和存留在卵細胞核中的完全相同。因而在形成雌、雄配子時的細胞核分裂(減數分裂)也完全相同,儘管在雌性中最後結果是形成一個卵和三個極體,在雄性中是形成四個精|子。雖然赫特維克和魏斯曼公開爭論的是細胞學方面的技術性細節,但正如Churchill(1970)很有見地地指出的那樣,實質上卻是由他們的立場、概念不同所決定的。赫特維克代表了物理主義者生理學陣營,魏斯曼則代表形態學顆粒論分子學派。
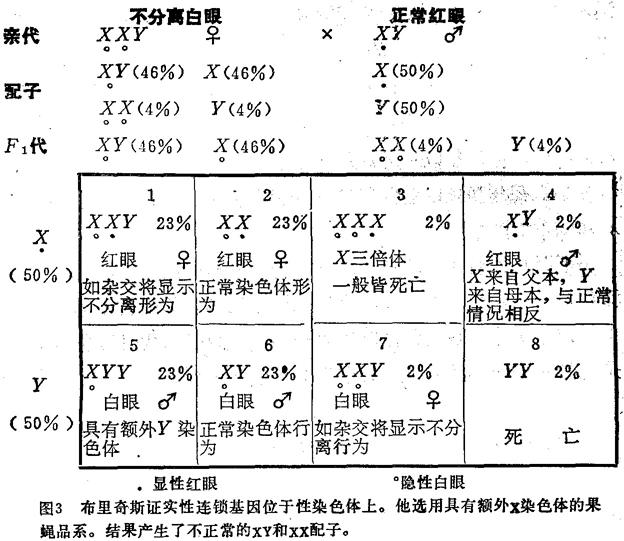
布里奇斯(摩根小組的成員之一)干1914年為染色體遺傳學說提供了一個更有說服力的證明。當一個白眼雌果蠅(在兩個X染色體上都具有隱性白色等位基因)和一個正常紅眼雄果蠅(在其單個X染色體上帶有顯性紅色等位基因)進行雜交時,F1代產生相同數目的雜合性紅眼雌蠅和白眼雄蠅。這是兩個親本的遺傳組成所決定的,必然如此。
後來玉米成了細胞遺傳學的優良研究材料。雖然它沒有後來在果蠅研究中非常有利的巨型染色體,但是它所含有的全部十個染色體在形態上都不同,而且有時還有額外的染色體存在。麥克林托克利用玉米的這些特點進行了30多年艱苦而又出色的研究來解釋基因的作用;這一解釋雖然內容豐富而又具有獨到見解卻一直等了很多年在分子遺傳學家得到了相同結論之後才被舉世公認。
染色體重排
從染色體研究一開始就觀察到一切染色體在外觀上並不一定必然完全相同。
嬰兒的性別是由什麼決定的這個問題至少是從古希臘時就有各種各樣的猜測。我們現在知道早期的有關學說都是錯誤的。(詳見Lcsky,1950;Stubbe,1965)。有的說是由胚胎在子宮的左邊或右側決定,有的說是由精|子來自主睾丸還是右睾丸決定,還有的說是由精|子的數量、雄性或雌性體液的「熱力」等等決定。這些學說的共同點(也是具有決定意義的一點)是性別並不是由遺傳塊定而純粹取決於與受精動作巧合的環境因素。
孟德爾充分了解表現型性狀是成群出現,在他所選用的性狀中則是成對出現。1900年以後的研究工作證實了對應于某個表現型狀的物質基礎可以有二者擇一的表現形式或表達。將之直譯成希臘文,這些二擇一的(決)定(因)子就是「相對基因」
1904年法國庫恩奧(Cuenot)在家鼠中發現一組性狀可能有兩個以上的等位基因;例如在家鼠這一特殊情況下其皮色可能是灰、黃、黑色。貝特森、凱塞爾、Shull、摩根以及其他遺傳學家後來也發現了這類復等位基因現象。人類的ABO血型就是人所共知的例子。Sturtevant(1913)首先解釋了復等位基因現象,將之歸因於同一基因(座位)的各種可供選擇到狀態。這完全否定了貝特森的基因作用的有或無學說(Presence-absence tbeory)。在某些特殊情況下一個基因有50個以上的等位基因,例如牛的血型基因以及植物的某些親合性基因(compatibility genes)、脊椎動物的組織親合性基因。和孟德爾定律相符,在某一配子中永遠只有單個等位基因,但在受精時它能夠和存在於種群基因庫中的許多不同的任何一個等位基因結合。在遺傳學歷史上後來還發現在某些雜交中基因的行為九_九_藏_書與等位基因相似而在其他雜交中則並不如此(擬等位現象,pseudoallelism)。Lewis及Green對這類情況的分析使人們對基因本質的認識更深入了一步(見下文)。
當時很快就被大家公認的唯一事實是卵母細胞和精母細胞(即最後發育成卵子和精|子的細胞)的染色體數目和一般的體細胞相同,都是二倍體;而由減數分裂產生的配子(卵子和精|子)的染色體數則只有原來的一半,是單倍體。當減數分裂的實質被充分了解了以後才知道卵細胞的細胞核的成熟和精|子的完全相似;但是乍一看這兩類細胞的成熟過程卻十分不同,因而在下面將之分別介紹。
減數分裂的第二次細胞核分裂很特殊,因為只是核分裂而染色體並不分裂。結果是有一半染色體進入子核,另一半進入另一個細胞核。在蛔蟲,染色體數目就因而從四個減少到二個。這第二次分裂被魏斯曼稱為減數分裂(reduction division)。在卵細胞中的兩個子核之一又作為第二個極體被排除。
某些歷史學家聲稱摩根及其研究小組是染色體遺傳學說的創始人這種說法顯然並不正確。染色體個體性的證實(這主要是波弗利的貢獻)、茹的關於染色體必定是由不同性質的遺傳顆粒直線排列而成的論點、以及孟德爾分離現象的發現,可以說必然會在1902-1904年導致瑟頓-波弗利的染色體遺傳學說。這一學說提出後幾乎立即就被大多數細胞學家接受,因為這隻不過是以前20年細胞學發展的必然產物。
這樣一來就形成了一個「交叉」(chiasma),在減數分裂第一前期的後期階段是成對的兩個染色體保持接觸的地點。按Janssens的觀點交叉表示一個父本的和一個母本的染色體的交換。最後結果將是一個由父本和母本染色體的片段組成的新染色體。摩根小組所研究的不完全連鎖和Janssens的觀點相符。
遺傳現象的染色體學說現在已經可以用基因學說(Morgan,1926)來補充。1915年前後摩根及其同事研究了一百多種突變型基因。它們分成四個連鎖群,和果蠅的四個染色體非常一致。連鎖群的染色體實質的間接證明至此便告完整。然而一直到1931年Stern才運用某些異常基因(X基因片段貼附在第四個小染色體上)為交換提供了細胞學證明。同一年Creighton和麥克林托克(1931)在植物(玉米)方面也提出了類似證據。
Henkins於1891年在昆蟲紅椿(Pyrrhocoris)減數分裂時發現有一半精|子具有11個染色體,另一半精|子除了這11個染色體外還額外有一個染色很深的物體。由於拿不准它是不是染色體,Henking將之用字母X表示。Henking並沒有將這X體與性別聯繫起來。
物理主義者對必須承認或接受顆粒(性)基因觀點感到驚詫不安。對他們來說這無異於先成論以現代打扮復活。先成論與後生論之間的爭論如果是以雛型人(homunculus)與活力(visviva)的形式相爭當然早已結束。雖然在胚胎學誕生(1816-1828年左右)之後先成論的雛型人觀點由於過於荒謬已不再被人考慮,但是自從生物學家意識到遺傳現象的精確性后,後生論的一般化活力或發育力也同樣站不住腳。對茹,魏斯曼和波弗利來說,遺傳的精確性顯然要求提出種質的結構,即遺傳物質在結構上的複雜性,後來表現為瑟頓-波弗利染色體學說。物理主義者難於理解如果不是返回到Bonnet的樸素先成論怎麼可能相信這樣的觀點。
根據這一推理斯特體範特(當時年僅19歲!)推算了基因在染色體上的位置和順序並制出了普通果蠅(Drosophilamelanogaster)的X染色體的第一份染色體圖(發表於1913年)。他由之證實了當時所知道的這一染色體上的基因是沿著染色體作線性排列的。
每個細胞核的染色體組是由一對同源染色體組成,其中一個來自父本,另一個來自母本。在第一次減數分裂時,這一對同源染色體彼此從側面貼得很緊,這種配合成對的過程稱為「聯會」。起初對這種配對過程所發生的一切細節完全不清楚;兩者彼此貼合得如此密切,以致顯微鏡觀察分析無法確定在第一次減數分裂;的前期究竟是怎樣一回事。幾乎又過了30年才通過遺傳學分析對這過程基本研究清楚(見下文)。波弗利和赫特維克所觀察到的是終變期(濃縮期)之後的染色體分開,正像正常有絲分裂時那樣。
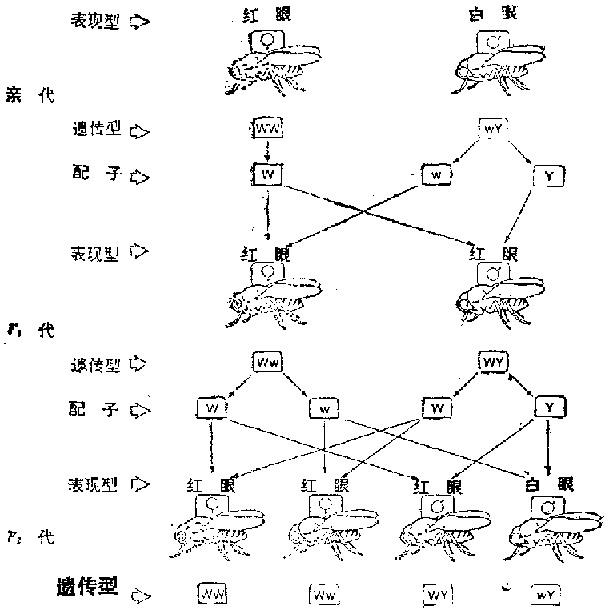
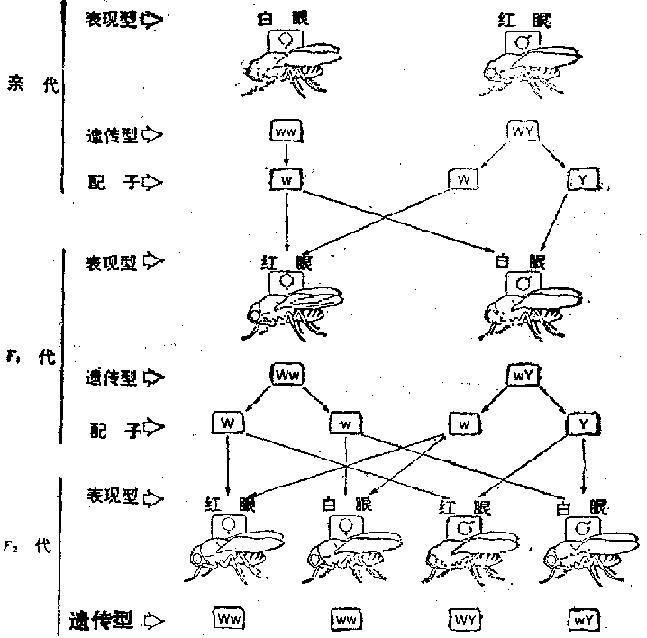
如果細胞核只是一個裝滿成對微芽的口袋,在配子形成之前這些成對微芽將會分開並獨立分配,孟德爾的這一發現就很自然,不值得奇怪。然而由於細胞核物質是組織成染色體的,而染色體在配子形成時又是作為一個整體進行分離,所以就不會有比染色體數目更多的獨立性狀對。孟德爾的七個性狀自由組合這一點和事實相符,因為後來過了很久之後發現豌豆恰好只有七對染色體(見下文)自從重新發現孟德爾定律後進行了越來越多的雜交試驗,在這些試驗中發現了與自由組合不相符的例外(首先是柯侖斯於1900年在紫羅蘭中發現的,其他的是由貝特森小組發現),然而由於下面即將提到的原因這類例外很難解釋。在白眼果蠅中性別和眼睛顏色並不自由組合這一情況很快就被摩根發現。當他將F1代果蠅雜交時,F2代果蠅中紅眼與白眼的比值為3:1,但所有的白眼都是雄果蠅,而在所有的紅眼果蠅中雌雄比2:1(見圖2a)。在其他的一些雜交中,結果更出人意料。例如白眼雌果蠅與正常購紅眼雄果蠅雜交時,所有的雌性後代都是紅眼,所有的雄性後代都是白眼(圖2b)。
性染色體
不分離
在染色體的個體性(獨立性)已經得到證實、並且至少發現了一種性狀(性別)和特定的染色體有關之後,遺傳學家便得以集中力量探索更深入的關於染色體和性狀的問題,或者用約翰遜的話更具體地說就是染色體與基因之間的關係問題。染色體是不是作為一個整體來控制全套性狀(比方說就像一個新開拓戰場的指揮中心)?個別的基因是不是位於染色體的特定部位?如果不同的基因處於同一染色體或位於不同的染色體上,它們之間的相互關係怎樣?這些問題在一個比較短的時間內(基本上是在1905-1915年10年之間,實際上大部分是在1910年到1915年)都取得了答案,這些答案是通過巧妙的遺傳學實驗並不斷用細胞學證據來檢驗而取得的。這些實驗總是從相當簡單的孟德爾現象開始。
在短短的幾年之內傳遞遺傳學的一切主要方面都被摩根和他的小組闡明清楚。凡是貝特森、德弗里、柯侖斯,凱塞爾(Castle)以及其他早期的孟德爾主義者所沒有找到的正確答案(實際上是沒有提出正確的問題)都由摩根小組出色地完成了。其所以如此,一個重要的原因是摩根雖然是胚胎學家出身,但是他將基因生理學和個體發生問題扔在一邊,審慎地傾注全力于傳遞遺傳學。他沒有去臆測遺傳定律而是探究事實和這些事實的最簡單的可能解釋。他是一位徹底的經驗主義者。
這一個簡單的事實、在實驗室培養(物)中出現了單個異常的個體,卻引起了一場名符其實的雪崩式的研究熱潮。首先提出的問題是,這個「白眼」性狀是怎樣產生的。
基因多效性(Pleiotropy)和多基因(Polygeny)的發現(見下文)最終導致了「單位性狀」學說被否定(或至少是被大大修正)。這就使得染色體學說的追隨者擺腕了粗俗的先成論影響從而有利於縮小兩個陣營之間的鴻溝。然而這場論戰毫無疑問是以顆粒論者輕而易舉地取得勝利而結束。顆粒論者的學說最後被稱為遺傳的分子學說。
對立面的一個比較充分的反對理由來自胚胎學。1883年茹提出的遺傳物質等量分裂學說從表面上看來很快就被茹本人的鑲嵌發育論點以及細胞譜系研究的結果所否定。
雄配子形成時也發生同樣的兩次核分裂,所不同
九_九_藏_書的是沒有子核以極體形式被排出。染色體研究
(allelomorphs,貝特森的術語)或等位基因(alleies)。孟德爾遺傳中這樣的一些表現型性狀的二擇一定子的發現便對變異的起因問題能作出完全新的解釋。這使人聯想起豌豆的光滑對皺皮、黃與綠,或者其他的類似成對性狀可能有相同的物質基礎。等位基因所表一現的性狀應當格好是同一遺傳物質的兩個譯本。
17.8減數分裂(成熟分裂,Meiosis)
1890年代一個又一個的胚胎學發現似乎更容易被魏斯曼的種質不等分裂學說解釋清楚,而孟德爾的均等分裂卻難於解釋。發育現象與瑟頓—波弗里學說之間的表面矛盾經過幾十年的分析研究和概念更新才最後解決。
等位基因
但是在摩根的實驗室中出現了一種異常的果蠅品系,在這樣的雜交試驗中這一品系的果蠅在其F1代中約有4.3%是白眼雌蠅和紅眼雄蠅。關於這試驗的細節和解釋,在經典遺傳學教科書中都有詳細介紹,這裏不再重複。布里奇斯曾設想這一品系的雌果蠅不僅有兩個X染色體還有一個雄性Y染色體。這一XXY雌果蠅可能是當一個具有兩個XX染色體的異常卵子(由於減數分裂中的差錯)被一個Y精於授精后產生的。當這樣的一個具有三個性染色體(兩個X,一個Y的個體在形成配子時,或者這兩個X染色體進到不同的配子(卵子)中,形成X和XY卵子(實際上所形成的配子中91.8%就是這種情況)多或者是兩個X進入一個卵子,Y進到另一個卵子,形成XX和Y卵子(約佔8.2%)。經過正常的、帶有X或Y的精|子授精,XXX和YY合子不能生存而死亡,然而有少數的特殊紅眼雄蠅(XY)和白眼雌蠅(XXy)產生(見圖3)。布里奇斯的設想後來由細胞學觀察證實,即證實了這一品系的果蠅有XXY雌蠅和XYY雄蠅存在。
將這一罕見的白眼雄果蠅與同一代的雌果蠅交配,摩根發現雖然F1代都是紅眼,但在F2代又出現白眼雄蠅,這表示白眼的遺傳因子是隱性,它必然是由紅眼基因驟然變化所產生的。摩根在幾年前曾訪問過德弗里在荷蘭的實驗室,也就為這新等位基因的起源採用了德弗里的「突變」這一術語。由於德弗里的進化突變學說以及月見草突變的染色體性質,這一術語的轉移引起了不利的後果,在隨後的二三十年中造成了一定的思想混亂(Anen,1967;Mayr and Provine,1980)。然而遺傳學家和進化論者最後都習慣了摩根賦予「突變」這詞的新涵義。
孟德爾的重要發現之一是「雜種(組合)中的每一對不相同性狀的行為與兩個親本植株的所有其他差異無關」(1866:27)。現在我們一般將之稱為性狀自由組合定律。
然而到了1910年摩根幾乎在隔夜之間轉變成染色體學說的主要支持者之一併提供了一些具有決定性的有利證據。怎樣解釋摩根的這一急劇轉變?這一急劇變化從他在轉變前後所發表文章的日期得到證明。
我們也可以用遺傳學的術語來表達減數分裂的細胞學內容。假定新合子的形成是由於父本和母本染色體組匯合的結果,其中一個染色體具有等位基因A(來自父本)和一個具有等位基因a的染色體(來自母本)相匹配產生合子Aa。從這個新合子的第一次卵裂開始,這兩個同源染色體就將一直保持配對,在發育中的生物的所有體細胞都將是雜合的Aa。只有在配子形成時的第二次成熟分裂(減數分裂)時這兩個同源染色體才分開,形成同等數目的具有基因A的配子和具有基因a的配子。至干哪一個染色體進入到子細胞中去則純屬偶然(見下文)。這樣一來孟德爾的分離定律就能被受精作用和配子形成時所觀察到的染色體行為圓滿地加以說明。減數分裂介紹到這裏可以很好地解釋連鎖和分離現象,但是到此,問題還沒有結束,還不能解釋前面所指出的不完全連鎖現象。但這可以用減數分裂中的另一種過程、交換來說明。植物的減數分裂就染色體而言和動物的相同,但通常發生在生活史的一個不同階段(孢子形成之前)。
摩根和他的助手斯特體範特LewiS,1961)認為源於交換的不完全連鎖的份額表示遺傳因子在染色體上所處位置之間的.直線距離。染色體在兩個基因之間斷裂的機會(也是交換的機會)取決於這兩個基因在染色體上的距離;距離愈近,斷裂機會愈少。
Van Beneden(1883)發現當蛔蟲的卵在受精時雄蟲精|子的兩個染色體和卵子細胞核的兩個染色體聯合,形成具有四個染色體的合子的新細胞核。這個受精后的卵細胞在隨後的卵裂中所產生的每個細胞都含有四個染色體;這每個細胞是「二倍體」,其染色體數目是配子的二倍。如果在每次受精中染色體數目都增加一倍,則子代的染色體數將比親代多一倍,如此一來,每個細胞很快就會具有成千上萬的染色體。很明顯,在受精作用中必然有某種過程抵銷染色體數量的成倍增長。Strasburger(1884)和魏斯曼曾先後提出在配子形成以前必須進行「減數分裂」。波弗利(1887-1888)也同意魏斯曼的意見,後來赫特維克在1890年對這減數分裂過程作了詳盡而又正確的描述。
因此當凱塞爾發現表現型發生變化時(現在知道這是由於修飾基因的作用),他就只能按與一個基因一個性狀假說相一致的觀點來解釋,並促使他提出了「污染學說」(見前)。
這一領域的重要進展是採用了各種新技術的結果。例如目前通過組織培養(使細胞擴增),浸於低滲溶液(同樣使細胞增大),秋水仙素處理(抑制紡錘體形成和使染色體收縮)等技術決定染色體數目遠比過去的壓片法精確可靠。又例如通過新技術使人類染色體數目從48個修正為46個。在很多研究中,諸如與人類遺傳病有關基因的定位,正確鑒別個別染色體都非常重要。染色體在組成上很複雜,某些化學處理對其中不同組分的影響有區別因而在染色體上出現不同的帶。根據所採用的顯帶技術不同可以分辨Q帶、G帶、R帶、T帶和C帶(參閱Caspersson andZech 1972)。用放射性物質(氚)將活組織的染色體加以標記可以得到另一類重要信息。
曾經使魏斯曼、赫特維克以及德國胚胎學家困惑不解的傳遞與發育之間的關係也起了作用。摩根及其小組決定將這兩個問題分開進行研究並從傳遞遺傳學著手。貝特森和其他反對細胞學說的學者則繼承了魏斯曼傳統,需要有一種同時能夠解釋傳遞和發育的遺傳學說。在身體各種各樣的組織和器官中含有完全相同的染色體(具有直線排列的顆粒性基因)就他們看來和所觀察到的發育現象並不相符。
圖2a紅眼母本的F1代雄蠅具有母本X染色體為紅眼。由於正常孟德爾分離,50%的F1雌蠅的F2雄蠅又為白眼
1902年以後,雖然有一些生物學家隨意談論染色體遺傳學說,但是它的準確涵義究竟是什麼當時並不十分清楚。大多數人指的是茹(Roux)提出的意見,即各個不同的遺傳因子(現在應當說基因)在染色體上的直線排列。然而這並不是問題的全部。細胞學家在1870年代到1890年代發現了許多肯定與遺傳有關的染色體現象。1900年以後對這些現象進行了系統研究,尤其是摩根研究小組在1910年以後的研究,這大大促進了染色體學說的發展。
很快就證實了一切其他生物都能突變,從人類和其他哺乳動物到最簡單的動物、各種植物、甚至微生物。事實上從1920年直到195O年研究突變似乎是最有希望的、能闡明遺傳物質本質的研究路線。突變過程的研究同時也提出了一些難於解答的問題。在突變時基因究竟發生什麼變化?能不能在控制條件下(即在實驗條件下)產生變異?德弗里早在1904年就提到「X射驗和鐳射線都能穿透生物細胞,可以用來改變生殖細胞中的遺傳顆粒」(Blakeslee,1936)。自從1901年以後一直試圖通過X射線,鐳射線,溫度驟變(溫度休克),或化學藥品等辦法誘發突變。由於各種技術上的缺陷(異源性物質,試https://read.99csw.com樣數量小等等),起初都沒有得到明確結果。通過穆勒百折不撓和獨創精神傾注全部心血進行研究一直到1927年才取得成功。
過去常常有人提起孟德爾沒有遇到連鎖現象真是一件怪事。豌豆(Pisum sativum)只有7對染色體,孟德爾也正好研究了7對性狀。它們沒有連鎖起來是不是運氣好從而為孟德爾減少了一項額外的麻煩?看來並不是這樣。我們知道孟德爾在正式著手他的豌豆試驗之前曾經花了幾年時間進行預備雜交試驗,他很可能將在幾代不顯示自由組合的一些性狀(或至少是成對性狀中的一個性狀)棄置不顧。也可能是他由之取得試驗材料的種子商偏愛自由組合的那些性狀。最後,某些基因的基因圖距(離)足夠大,即使是都處在同一個染色體上也能顯示自由組合現象。
我這樣劃分時所用的稱呼與1910年時的情況可能並不貼切。例如在1800年以後對任何一個人貼上先成論者的標籤就十分容易引起誤解。物理主義者原則上是極端的還原論者,但在這裏他們分析入微的程度還不及顆粒論者。物理主義者也是機械論者,顆粒論者亦復如此。物理主義者總是搜索運動和力;他們偏好「動態」解釋;他們企圖將一切(定)量化並用數值表示。顆粒論者則按性質上不同的顆粒來解釋生物學現象,按結構、形態、獨特性、歷史變化以及種群方面來解釋。他們的「物質性」解釋促使他們求助於分子(因而是化學)而不是力(從而不是物理學)。
性狀自由組合與連鎖
必須強調的是這隻是對兩個陣營的爭論和立場的極其簡略的介紹。每個參与者,例如貝特森、約翰遜、赫特維克和摩根都各有自己的特殊混合觀點,實際上有時是相當不合邏輯的、彼此矛盾的混合觀點。然而染色體學說或者與他們的生物概念相一致,或者不一致。如果不一致,他們就必須或者反對或者放棄長期珍視的信念。貝特森和約翰遜無疑是最頑固的科學家。
1910年摩根是48歲,素以堅持己見著稱;和貝特森相反,當新的實驗表明他原先的解釋不合適時他能夠改變自己的想法(在一定程度上!)。然而摩根的思想顯然還受到他周圍智力(理智)環境的影響。他的一些發現證實了幾乎10年前他的朋友和同事威爾遜(E.B.Wilson)向他陳述的意見。威爾遜的論點又被摩根出色的青年合作者隊伍所深化。這些年輕人的特色是天資和性格的多樣化,沒有摩根的19世紀偏執。摩根小組成員的主要特點曾由Jack Schultz(1967)——他也是摩根小組的後期成員之一——作過如實的刻畫:「摩根的懷疑態度和穆勒的系統觀點……斯特體範特的卓越分析能力和布里奇斯的出色實驗技巧。」這個小組的所有年輕成員,其中大多數人成天關在那小「果蠅室」內,都在摩根的領導下工作。在這個小組的四個成員中究竟是誰在哪些特殊方面強化或充實了染色體學說已無從查考,而且也無關緊要。研究摩根的史料專家是斯特體範特(1965a)和Allen(1967;1978),研究穆勒的是Carlson(1966;1974)和Roll-Hansen(1978b)。由於這些「果蠅室的居民」的多樣性,他們非常融洽妥貼地相互補充並且作為一支隊伍十分自如地運用假說一演經法。1911年以後很可能是穆勒,布里奇斯和斯特體範特提出大部分假說,而摩根則一如既往地堅決要求這些假說必須通過實驗徹底地加以檢驗。
鑒於這學說的說服力極強卻又遭到強烈反對(甚至包括最著名的遺傳學家如貝特森·約翰遜,起初還有摩根),這不能不使歷史學家感到相當迷惘。這顯然涉及到生物學中兩個主要學派之間根深蒂固的概念分歧。由於染色體學說是間接地根據許多不同的事實推論而得,而反對者所要求的則是證據,特別是實驗證據。後來摩根小組及其他學者雖然提供了這些證據,但已是1910年以後的事,發生在摩根從染色體學說的反對者轉變成支持者的時候。
17.9摩根與染色體學說
我將試圖說明這在總體上或特殊問題上都是如此。
至於染色體學說為什麼道到如此激烈的反對這個問題從研究當時的文獻資料就可以找到答案(Coleman,1970;Roll-Han sen,1978b)。染色體學說不僅僅是生物學知識大廈的只石片瓦,更重要的倒是它是檢驗生物學中兩種根本不同的哲學或兩種對立的世界觀的一個例證。在受精作用的實質上(接觸或融合)以及19世紀的一些其他爭論(例如細胞核的起源)上也都表明了這兩種學派的分歧(另見Coleman,1965;Churchill,1971)。按1910年當時的情況很難說清這兩個對立陣營。我有這樣一種印象,即一方是物理主義者一後生論者一胚胎學家陣營,另一方是顆粒論者—先成論者—細胞學家陣營。
在卵細胞中這分裂是在卵的外周進行,有一組子染色體(daughter chromosomes)以單個極體的形式被排除。
Carlson(1971)堅持認為穆勒在概念上是一位分子遺傳學家,這當然是正確的,但穆勒並不是第一人。在穆勒以前的魏斯曼,德弗里和其他人早在1880年代就毫不含糊地提到遺傳現象的分子基礎。
染色體在形成交叉時偶爾會完全斷裂,然後再按新的方式重新組裝而不僅僅是在斷裂處併合在一起。如果發生了兩次斷裂,中間的一段可以倒轉過來,這就是染色體「倒位」。如果著絲粒不在倒位的染色體節上就是臂內倒位;如果著絲粒包括在這個染色體節內就稱為臂間倒位。當染色體的某一片段斷裂下來后附著在(或插入)另一個不是同源的染色體上就出現「易位」(現象)。有時也發生「不(相)等交換」,形成兩個子染色體,其中一個染色體有重複,而另一個有缺失。兩個(具有近端著絲粒的)染色體可能併合或一個(具有中間著絲料的)染色體可能進行分裂,這樣的變化稱為羅伯遜重排」(Robertsonian rearrangements)。最後,「多倍性」指的是多於染色體組基本數目兩倍以上的染色體。所有這些染色體變化在進化上都具有潛在的重要意義,但絲毫也沒有降低染色體遺傳學說的價值。具有遺傳影響的染色體重排往往稱為「染色體突變」。我在這裏沒有逐一介紹這些染色體突變的發現歷史,因為這對了解染色體進化並無意義。
摩根於1909年開始培育果蠅。他對德弗里的月見草突變的印像很深並試圖通過不同的化學藥品、不同溫度的處理以及鈣和X線輻射在他所培養的果蠅中引起突變,但是都未成功。然而在他的果蠅系譜培養(Pedigreed cultures)中有一個白眼雄蠅出現在紅眼果蠅的正常種群中。
性別決定有很多不同的模式,有時涉及多重性染色體,有時雄性是雜合性別而在另一些情況下雜合性別卻是雌性。所有這些細節可參考遺傳學或細胞學的任何一本教科書(見Wilson,1925;White,1973)。重要的一點是,論證了一種表現型性狀、即性別、和某一特定的染色體聯繫在一起。
在其後的10年中發現了更多的情況表明確實有這樣的額外染色體,或者有一對染色體在大小、染色性能或其他特徵上與其餘的染色體組不同。因為已經觀察到紅峙的一半精|子具有X(附屬的)染色體而其他的一半精|子沒有,McClung(1901)就據此作出如下的推理:「我們知道將一個物種的成員分為兩類的唯一性質就是性別,因此我推斷這附屬染色體就是決定胚胎的生殖細胞繼續發育並使略有變化的卵細胞變成高度特化的精|子的要素,」也就是說這些多少不尋常的染色體是性染色體,起決定性別的作用。但是McClung這一結論的某些細節是錯誤的。NettieStevens(1905;見Brush,1978)和威爾遜(E.B.Wilson,1905)不久就正確地確定了性染色體在確定性別中的作用。
下面從染色體在配子形成時的行為開始介紹。卵子的細胞核和精|子都是「單倍體」,也就是說它們具有的染色體數目是(二倍體)體細胞染色體數目的一半。在配九-九-藏-書子形成時染色體數目是怎樣減成一半的而且這又怎樣會影響遺傳?
另外的一個反對理由來源於第一個顆粒遺傳學說過於簡單。在1900年代早期對遺傳型和表現型之間的區別還並不清楚。雖然先成論的雛型人學說已被徹底否定,但在某些胚胎學家和遺傳學家的思想中它卻被另一種模式代替,即生物的每一個性狀是由種質中的某一個特定遺傳因子代表的。遺傳型可以說成是微型的表現型,雖然不是雛型人卻是遺傳顆粒(不論是微芽、泛子或其它)的鑲嵌,每個鑲嵌相對於表現型的特定部分。這種想法表現在早期孟德爾主義者的「單位性狀」概念中。德弗里(1889)特別指出泛子從細胞核移入細胞質,並在細胞質中發揮發育作用。因此體質是由發育后的泛子組成。
交換過程是如此複雜以致差不多花了30年時間最後才能決定哪一種解釋是正確的(見Whitehouse,1965。這是值得一讀的一本書)。然而現在已充分證實交換髮生在四線期,涉及四個染色單體中的兩個單體。另外還證實在四線期一開始就發生交換(Gred,1978)。
1910年8月「美國博物學家」雜誌發表了一篇摩根(1910a)激烈攻擊染色體學說的長達48頁的論文(論文收到日期是2月),這正是在摩根的著名「白眼」論文(1910b)發表(7月27日,收到日期7月23B)之後的三個星期,這后一篇文章有助於摩根放棄他對染色體學說的反對態度。
圖2b在互交(正反交)中,F1雌蠅接受了母本的X染色體。如果母本是純合隱性白眼,其全部雄性後代將均為白眼,儘管其父本為紅眼很明顯,性基因和眼的顏色基因並不自由組合。
摩根從1903年到1910年在一些著作和論文中曾尖刻地攻擊染色體學說(Allen,1966)。他的反對論點很多,首先一點是這學說只是「推論」,缺乏實驗根據。摩根認為凡是沒有被實驗證實的就算不上科學。他非常輕視「哲理化」。尤其重要的是,提出性狀是由顆粒控制而且這些顆粒又位於各個不同的染色體上是和他的生物現象學說(見下)完全衝突的。
細胞學者發現動物在形成配子時發生兩次連續的細胞分裂,它們和正常的有絲分裂十分不同,後來將之稱為減數分裂或成熟分裂(me1os1s)。在減數分裂時究竟發生了什麼勒化(或者更確切地說染色物質是怎樣減少的)這個問題卻長期爭論不休無法解決。
對進化過程來說由交換而實現的染色體重建非常重要。它是父本和母本基因相混合的有效機制,並通過產生基因在染色體內的新組合來提供非常豐富的新遺傳型(其數量遠遠超過由突變所提供的)以便自然選擇發揮作用。
在此以前(Wilson,1909)和以後,還先後發現了一些不分離現象,包括個體含有額外的常染色體。例如人類中有三個21號染色體,被稱為由於不分離的21號染色體三體,它是唐氏先天愚症(Downs Syndrome伸舌白痴)的原因。在很多種植物中有的個體具有額外的染色體(三體)或失去了一個常染色體(單體)。這些個體能夠生存並被用來研究同一基因的各種平衡效應。例如曼陀羅屬12對染色體的任何一種三體不僅能夠存活並且有特殊的形態。煙草屬23對染色體的任一種單體也是如此。
比利時細胞學家Janssens(1909)指出,當四個染色單體彼此盤繞在一起時,一個父本的和一個母本的染色單體可以在它們彼此交叉處斷裂,斷頭在重新連結時總是父本單體的斷頭連在母本單體的斷頭處,反過來也是如此。另兩個染色單體仍然保持完整。
德弗里、柯侖斯、波弗利和瑟頓實際上也早已從理論上預言過連鎖現象。他們是根據染色體的個體性和(通過細胞有絲分裂周期的)連續性進行推理的。
某些明睿的孟德爾主義者並沒有忽視這樣一個事實,即1:1的性(別)比(值)和一個雜合子(Aa)與一個純合隱性(aa)雜交所得到的比值完全相同。孟德爾在1870年9月17日給內格里的信中就已經提到這一點。其他學者(strasburger和凱塞爾)在1900年以後也提出了相同的看法,然而柯侖斯卻首先提出實驗證據指陳雌雄異株植物瀉根屬(Bryonia)的一半花粉是決定雄株的,另一半是決定雌株的,而所有的卵在性別決定上則不分雌雄。在這種情況下雄性是雜合的,按威爾遜(1910)的術語是異型配子的,雌性是同型配子的。後來證明鳥類和鱗翅目昆蟲的雌性是異型配子的,而哺乳類(包括人)和雙翅目昆蟲(包括果蠅)的雄性也是異型配子的。這樣看來,性別是否可能和某一特定的染色體有關?後來逐漸積累了大量證據證實了這種設想。
關於染色體學說的發展和迅速累積的遺傳學數據的一致性早在1915年就由摩根、斯特體範特,穆勒和布里奇斯在他們合著的《孟德爾遺傳學的機制》一書中非常明確地闡述過。因此為什麼貝特森、約翰遜等還繼續反對染色體學說就令人費解,為什麼摩根的兩個最親密助手、斯特體範特和布里奇斯不僅沒有忽視這學說反而感到需要用更新的實驗來論證染色體學說的正確性。他們醉心於探索各種表面上的例外或矛盾情況,以便證明這些情況他們都可以用染色體學說加以解釋。有人曾感到奇怪,他們為什麼不像穆勒那樣闔上書本去研究新問題。就我看來,從1915年到1930年在果蠅遺傳學上具有高度創見和一絲不苟的研究工作基本上並沒有對瑟頓-波弗理學說提出任何重要修正。反而這些研究卻論證了這學說的正確性並指陳了它在生物學上的重要意義。
(Stuvtevant,1959;1965a )。
17.6性別決定
布里奇斯這項研究的重要意義在於它第一次提供了性連鎖基因是由X染色體攜帶的直接證明。他的結論在後來一再被證實。自此以後就更加沒有理由反對染色體學說,雖然還有少數學者,如貝特森和Goldschmidt,仍然懷疑,甚至摩根也在一定程度上表現模稜兩可。
人們在怎樣稱呼這兩個陣營最確切這一點上可能有爭議,但對它們在解釋生物現象本質這個問題上根本不同這一點上則都是一致無疑的。貝特森、約翰遜以及摩根起初都是物理主義者,如果染色體遺傳學說是正確的,這就意味著要否定他們自己的概念結構。
染色體另外一個作用是能促進重組(recombination),即在成熟分裂的減數分裂中父本和母本染色體的獨立運動。1902年以前普遍認為父本和母本的染色體組作為各自的單獨單位運動。例如某些學者以為在卵細胞的成熟分裂時所有的父本染色體都以極體的形式被排除,然後通過受精由來自父本的新染色體組代替。如果真是這樣,單性生殖卵在成熟時就不會產生極體,然而波弗利證明單性生殖卵不僅產生極體而且極體形成的方式和有性生殖卵的沒有任何不同。另外,雜合的雌體產生具有父本基因的配子。最後,CarotherS(1913)發現在具有大小不同的(異形性)染色體組的物種中,較大的染色體隨意向兩極運動。這是父本的和母本的染色體組並不作為單一的單位進行分離的決定性證據。然而有一種罕見的遺傳現象、「減數分裂驅動」(mciotic drive),阻止染色體任意移向兩極。這能說明在某些情況下種群中保存了在其他情況下有害基因的現象。
雖然後來(1900年以後)發現了性別的遺傳基礎,但是某些著名的胚服學家和內分泌學家則仍然堅持環境決定論達數十年之久。我認在後面還要介紹某些生物的性別確實不是由遺傳決定的。
當摩根研究小組開始集中力量分析果蠅的遺傳結構時,不符合完全連鎖的例外情況成為一個嚴重問題。摩根及其同事發現,斷裂連鎖的幅度很大.有時可以低至1%,這樣的變異性怎樣解釋?
交換
摩根在1910年根據上述觀察斷定眼睛顏色因子(從紅色突變成白色)是和決定性別的X因子互相偶聯的。一年以後(1911:384)他特地從染色體的角度來解釋這類性狀偶聯現象:「我們發現的九-九-藏-書不是孟德爾意義上的隨機分離而是在染色體上相處很近的「因子聯合」(association of factors)。細胞學提供了實驗證據所需要的機制。」其他的一些突變,例如黃體色和小形翅也是:和性別連鎖的,也就是說位於性染色體上。其他的性狀連鎖群和性別無關,顯然是處在果蠅的其他染色體上,這些染色體被稱為常染色體或普通染色體(和性染色體區分開)。
在生物學的歷史上還很少有像摩根與他的同事一道工作那樣親密無間。因此很難確定摩根實驗室的大量研究成果或發現究竟應歸功於誰。有些歷史學家傾向於將幾乎所有的功績歸之於他的學生和同事。這未免太過份。應當記住自從摩根於191O年7月發表他的關於果蠅研究的第一篇文章以後的兩年中他連續發表了13篇有關20多個果蠅性連鎖(伴性)突變型的發現與行為的文章。在發現白眼后不久又發現了兩個性連鎖隱性突變型:「翅發育不全」,「黃色體色」。毫無疑問摩根在很早就闡述了孟德爾遺傳的大部分機制,這些都是他本人所作的貢獻。正如穆勒(Muller,1946)所說的:「無論將來會怎樣重寫和重新評價果蠅研究開始階段的歷史,摩根對交換現象的論證以及基因相距愈遠交換也愈頻繁的觀點就像一聲春雷,其重要意義絕不下於孟德爾學說的發現,這一點必然仍舊會被公認。」我在這裏所要強調的是摩根本人單獨地對連鎖和交換問題作出的貢獻,因為以後的討論重點放在問題上而不是果蠅實驗室中每個人的特殊貢獻。摩根和他的同事在哥倫比亞大學的「果蠅室」中培養了成千上萬的果蠅。他們在仔細審查這些果蠅中發現了新的突變不斷出現。摩根很快(191O-1911年冬)從哥倫比亞大學的未畢業學生中挑選了斯特體範特(Alfred H,Sturtevant)和布里奇斯(Calvin B.Bridges)兩人到他的實驗室工作,後來穆勒(H.J.Muller)也參加了這個研究小組(他還在摩根指導下攻讀學位)。這個小組的親密協作是生物學中的一段軼史佳話;「在科學實驗室中過去很少有如此激動人心的氣氛和如此的持續熱情。這主要是由於摩根本人的態度,他將熱情和批判精神融合在一起,大度、胸襟開闊並具有幽默感」
17.7摩根與他的果蠅實驗室
由於任何生物的性狀及決定這些性狀的遺傳因子遠遠超過它所含染色體的數目,所以從一開始就有人(Correns,1902;Sutton,1903,)認為每個染色體必定攜帶有幾個(如果不是許多)基因。這一點很快就被摩根研究小組證實。然而連鎖群(每個連鎖群和某個特定的染色體有關聯)的發現又提出了新問題。如果一個染色體上的所有基因都緊密地連鎖在一起,那麼一個生物將會只有它所含有的染色體的數目那樣多的獨立遺傳單位。這就會對重組施加極大的約束。德弗里(1903)在研究F2代雜種時所得出的結論是,F2雜種的重組的可能機會遠不符合全面連鎖的觀點。因此他提出在減數分裂的第一前期中成對的親本染色體發生「單位交換」(exchange of units)。至於「有多少和哪一些(單位將會交換)則可能純屬偶然」(1910:243),這表明交換總是相互交換。波弗利也曾預言過這類交換(1904:118)。遺傳學分析很快就證明了同一個染色體上的基因連鎖是不完全的。貝特森,Saunders,Punnett(1905)首先進行了這類觀察研究。在香豌豆(Lathyrus)的兩個變種(花色和花粉粒形狀彼此不同)雜交后的F2中,他們既沒有得到預期的9:3:3:1的比值,也沒有發現簡單的3:1比值,卻發現了69.5%的雙顯性個體,19.3%雙隱性個體,以及兩類5.6%雜合子。顯然這兩個性狀的基因既不自由組合又非完全連鎖(有11%例外)。貝特森曾提出過一個特別假說來解釋這一現象,但由於他不相信染色體學說,所以也就沒有考慮交換。
雖然目前對許多原核生物的DNA組織結構有了較多的了解,但是真核生物的染色體還很不容易分析(Cold Sprins HarborSymposia 1978)。目前還只知道DNA附著在(埋入?)蛋白質(特別是組蛋白)基質上,而且有跡象表明這些蛋白質在基因活性上具有決定性作用。然而儘管近年來已經發現了大量有關事實,就我看來,真核生物染色體作為一個整體,我們要提出一個解釋它的結構和功能的完整學說還為時過早,還有很多工作要做。因此,承認遺傳現象的染色體學說決不是染色體研究的結束,倒毋寧說是剛剛跨入染色體研究的一個新時代。
雖然摩根本人曾經發現(並正確地進行解釋)交換現象以及基因學說的其他必需證據,然而也有很多間接證據表明他多少是一個勉強的「轉變者」,有時還願意溜回到他原先在1910年以前的思想中去。一直遲至1926年他放棄了物理主義者的偏見卻又聲稱研究遺傳現象的學者關於基因的一切結論皆來自「數字的和定量的數據……基因學說……完全由數字數據求出基因的性質(就這學說所賦予基因的性質而言)」,就好像,在染色體上的位置就是基因的唯一性質!
舉一個特殊情況為例。有一組三個隱性基因-黃(體)色(y),白眼(w),小翅(m)-位於果蠅的X染色體上。如果一個具有這三個基因的雄蠅和一個正常雌果蠅雜交,可以預料這三個隱性基因將以連鎖群的形式在F2代中出現。實際上黃色和白眼的連鎖在果蠅中有1.3%斷裂,白眼小翅連鎖有32.6%斷裂,黃色小翅連鎖有33.8%斷裂。怎樣解釋這些數字?
這是對這類聯繫的首次決定性證明。在隨後的歲月中大多數遺傳學研究都是為了論證其他性狀與性染色體或其他染色體(常染色體或普通染色體)之間的關係。這類研究充實了染色體遺傳學說,其帶頭人就是摩根。他們的研究最後否定了一切染色體在遺傳功能上都是相同的學說。這一學說在190o年以後還一直很流行,雖然當時已經發現不少物種的染色體的大小極不一致。19世紀八、九十年代有一些生物學家之所以堅持這一(對我們來說)不可信的學說很可能是因為在有些物種中所有的染色體的確很相似。
例如,孟德爾將含有圓形黃色豆粒(這兩個性狀都是顯性)的豌豆品系與具有皺綠豆粒(兩者都是隱性)的另一個豌豆純育品系雜交。他在幾代採得的圓黃豆粒與皺綠豆粒的比值不是3:1。在這個特別試驗中他總共採得556個豆粒,其中315個為圓黃,101個皺黃,108個圓綠,32個皺綠,比值接近9:3:3:1。因而每一對性狀(圓對皺,黃對綠)的比值為3:1(圓、黃為顯性),但是這兩個性狀卻是彼此獨立進行分離。孟德爾發現他試驗的其他五對性狀也是如此,因而一度認為所有性狀都遵從這一自由組合定律。
這裏所介紹的有關交換現象的歷史是過於簡化的,漏掉了很多複雜問題。例如交叉(由交換產生的染色體斷片之間的橋樑)的實質一直長期爭論不休。每一染色體臂上的交叉數目極不一致,事實上在某些情況下並沒有交換現象,例如雄果蠅。關於第一次減數分裂中染色體的確切複製時間以及形成交叉(染色單體斷裂及癒合)的確切時間,甚至交叉的存在是否總是表示交換現象都有很多爭議。最重要的是,染色體中不同的染色單體的行為更是眾說紛壇莫衷一是。因而作為解釋交換現象的Janssens和摩根的斷裂併合學說(breakase-fusion theory)並不被某些學者接受,例如Belling又另行提出了「副本選擇」學說(copy-choice theory),Winkler提出「基因轉變」學說(gene-con-version theory)。雖然這兩種學說最後都沒有得到公認,卻促使人們進行了大量試驗從而對交換現象以及基因的本質有了更深入的了解。現在還沒有這三種學說的比較研究歷史著作。對這些技術上的詳細情況必須參閱細胞學和遺傳學教科書。(另見Grell,1974)。重要的是,一切看來是例外的情況最終都能按經典染色體學說加以解釋。